

Pravidla buněčné spolupráce
| 29. 9. 2026Buňky vznikly i díky tomu, že se membránou oddělily od okolního světa. Teprve když některé z těchto hranic začaly být řízeně prostupné, objevil se na Zemi první mnohobuněčný organismus. Příběh bílkovin, které umožňují průchod informací membránou, není jen příběhem buněčných spojů. Je příběhem evoluce pravidel, která z autonomních buněk vytvořila organismus.
Každá buňka je samostatný živý systém. Má vlastní genetickou informaci, metabolismus i hranici oddělující ji od okolního světa. Přesto žádná buňka lidského těla nedokáže za fyziologických podmínek dlouhodobě existovat sama. Její život je podmíněn životem milionů dalších buněk, které společně vytvářejí organismus.1) Jak se však z původně autonomních buněk stal celek, jehož vlastnosti daleko přesahují možnosti jednotlivých částí? Odpověď nehledejme v pouhé evoluci nových genů nebo buněčných typů, ale především v evoluci vztahů mezi buňkami.
Život začal vznikem hranice. Ve chvíli, kdy první buňka uzavřela část svého vnitřního prostředí do membrány oddělující ji od okolního světa, získala něco, co se stalo základem veškeré další evoluce – vlastní identitu. Buněčná membrána neoddělila pouze cytoplazmu od okolního prostředí. Umožnila vznik schopnosti udržovat uvnitř buňky podmínky odlišné od těch, které panují v jejím okolí (homeostázy). Teprve od té chvíle mohla buňka řídit vlastní metabolismus, růst, dělení i evoluci.
O více než tři miliardy let později se však objevila nová evoluční výzva. Jak z takto autonomních buněk vytvořit jediný organismus? Nestačilo, aby se buňky po dělení jednoduše přestaly vzdalovat. Shluky buněk vznikají opakovaně i u dnešních bakterií, sinic, řas nebo slizovek. Samotný větší počet buněk k vzniku mnohobuněčnosti nestačí. Skutečný organismus vzniká teprve tehdy, když se jednotlivé buňky vzdají části své autonomie ve prospěch vznikajícího celku.
Pozoruhodné přitom je, že molekulární předpoklady této změny vznikly ještě dříve než samotní živočichové. Nejbližší jednobuněční příbuzní mnohobuněčných živočichů – trubénky (Choanoflagellatea) – již disponují překvapivě rozsáhlým souborem genů pro schopnost buněk přilnout k jiným buňkám (adhezi, obr. 2), rozpoznávání sousedních buněk i nitrobuněčnou signalizaci. Evoluce jako by nejprve vytvořila slovník mezibuněčných vztahů a teprve později jej využila při stavbě prvních mnohobuněčných organismů. Geny potřebné ke spolupráci tak samotné spolupráci předcházely.
Vznik mnohobuněčnosti si často představujeme jako proces evoluce nových buněčných typů. Stejně důležitou inovací ale byl postupný vývoj pravidel, určujících jak spolu mohou jednotlivé buňky žít. Příliš malá míra spolupráce by znemožnila vznik tkání a orgánů. Příliš velká by naopak vedla k ztrátě buněčné identity, nekontrolovanému šíření poškození nebo k tomu, že by se specializované funkce jednotlivých buněk navzájem rušily. Evoluce proto nehledala co nejtěsnější propojení buněk. Hledala optimální rovnováhu mezi jejich individualitou a kolektivitou.
Prvním krokem bylo rozpoznání správného souseda. Dnes považujeme mezibuněčnou přilnavost za samozřejmost. Bez ní by však žádná tkáň nemohla vzniknout. Kadheriny, integriny, selektiny a další adhezivní molekuly nevytvářejí pouze mechanické spoje mezi buňkami. Současně nesou informaci o buněčné identitě. Každá buňka tak nepřetržitě vyhodnocuje, jestli sousedí se správným partnerem, kotví ve vhodné mezibuněčné hmotě a jestli na ni působí očekávané mechanické síly. Kontakt mezi buňkami je proto současně mechanickou oporou tkání i významným zdrojem regulačních signálů.
Význam těchto interakcí nejlépe vynikne během embryonálního vývoje. Americký biolog Malcolm Steinberg už v šedesátých letech 20. století formuloval hypotézu diferenciální adheze, podle níž se tkáně v mnoha ohledech chovají podobně jako nemísitelné kapaliny. Buňky exprimující stejné kadheriny spontánně vytvářejí společné domény, zatímco populace s odlišnými adhezivními vlastnostmi se od sebe oddělují. Mnohé hranice mezi tkáněmi tak nevznikají pouze podle genetického programu, ale také jako důsledek fyzikálních vlastností buněčných interakcí. Adheze však neurčuje jen to, které buňky zůstanou pohromadě. Umožňuje také vznik kolektivního buněčného chování. Embryonální vývoj totiž nelze chápat jako součet nezávislých rozhodnutí jednotlivých buněk. Mnohé morfogenetické děje vznikají až koordinovanou činností celých buněčných populací.
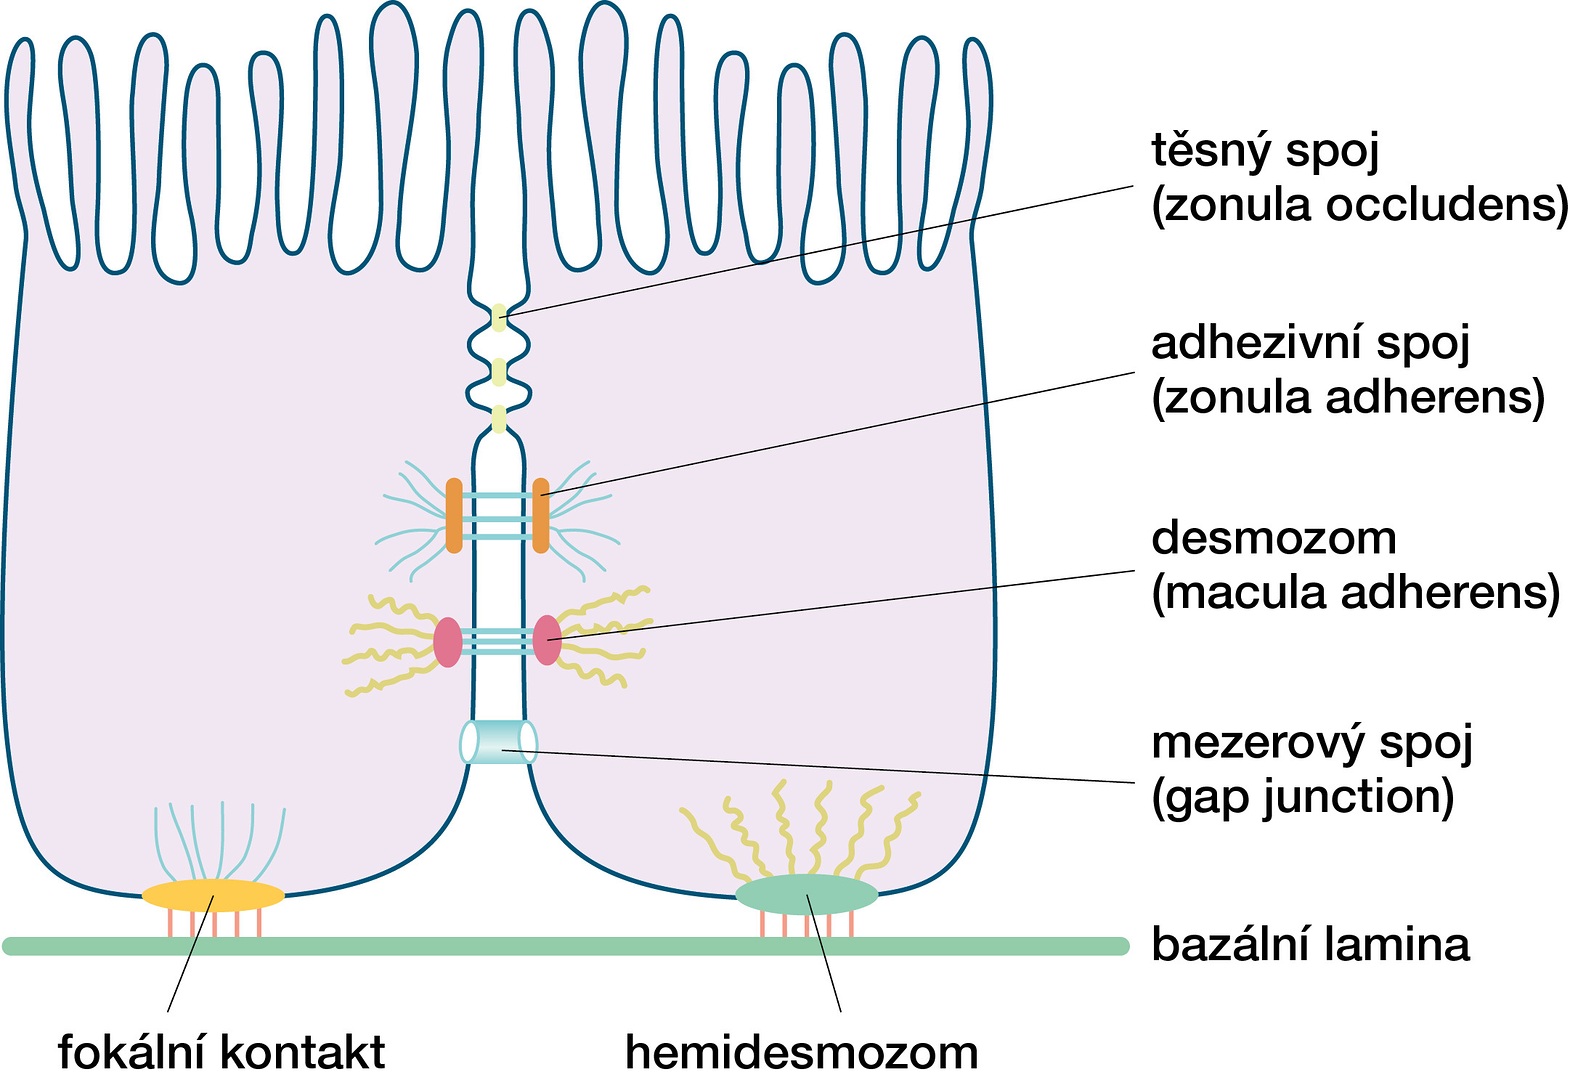
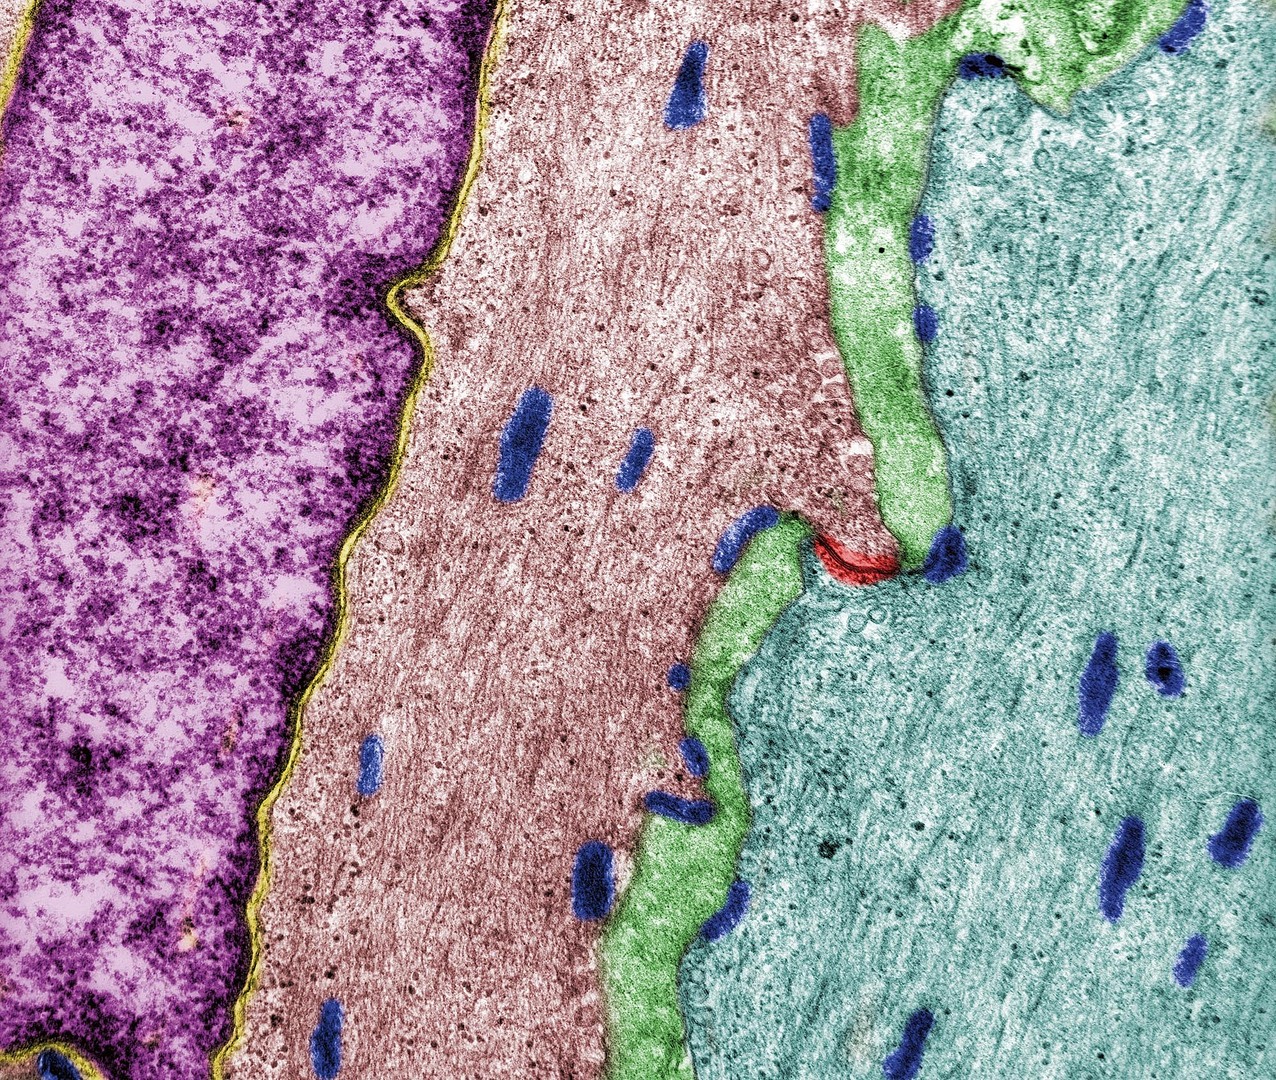
Působivým příkladem je neurulace – proces, při němž se z ploché neurální ploténky vytváří neurální trubice, základ budoucího mozku a míchy. Aby se původně téměř rovná epiteliální vrstva mohla ohnout a vchlípit (invaginovat), musí tisíce buněk téměř současně změnit svůj tvar. Na straně orientované směrem k povrchu těla se koordinovaně kontrahuje aktomyozinový kortex,2) buňky se klínovitě zužují a celá výstelka se začne ohýbat. Experimentální práce ukazují, že se na této koordinaci podílí nejen mechanické propojení buněk, ale také šíření nitrobuněčných signálů prostřednictvím mezibuněčných propojení (gap junctions, obr. 1). Výsledný tvar embrya proto nevzniká pouze podle genetického programu jednotlivých buněk. Je kvalitativně novou vlastností celé buněčné populace. Buňky si průběžně předávají informaci o svém fyziologickém stavu a reagují na chování svých sousedů.
Kromě neurulace ale známe i další příklady kolektivního buněčného chování, jako jsou gastrulace,3) větvení plic, modelování srdeční trubice nebo vznik srdečních oddílů. V každém z těchto případů se jednotlivé buňky nechovají jako izolované jednotky, ale jako členové koordinovaného společenství, jehož vlastnosti daleko přesahují možnosti každé z nich.
Adheze sama o sobě přitom nestačí. Mechanické spojení určuje, kdo je čí soused, nedokáže však vysvětlit, jak mohou sousední buňky společně reagovat na elektrický vzruch, sdílet metabolické zdroje nebo synchronizovat odpověď na změny prostředí. Organismus není statická stavba, ale dynamický systém, jehož buňky musejí průběžně synchronizovat svou činnost. Když se sousední buňky naučily bezpečně držet pohromadě, proč jim jednoduše neumožnit sdílet cytoplazmu? Ve skutečnosti šlo o jeden z nejriskantnějších evolučních kroků vůbec. Každá buňka si totiž pečlivě střeží vlastní homeostázu – přesně regulované vnitřní prostředí, které se liší nejen od okolního světa, ale do jisté míry i od prostředí sousedních buněk. Otevřít mezi dvěma buňkami přímý kanál znamená připustit, že část této individuality budou sdílet. Evoluce proto musela vyřešit zdánlivý paradox: umožnit sousedním buňkám fungovat jako koordinovaný celek, aniž by přestaly být samostatnými buňkami.
Řešením se staly mezerové spoje (gap junctions) vytvářející přímé propojení mezi cytoplazmami sousedních buněk. Každý kanál vzniká spojením dvou konexonů4) uložených v plazmatických membránách sousedních buněk. Každý konexon utváří šest molekul konexinů uspořádaných do pravidelného prstence, jejichž středem prochází úzký vodný pór. Už samotná architektura tohoto spojení naznačuje, že nejde o pouhé „otevření dveří“ mezi dvěma buňkami, ale pečlivě regulovaný průchod, propojující dva světy, aniž by je nechal splynout.
Přes tento kanál mohou procházet ionty a malé molekuly přibližně do hmotnosti jednoho kilodaltonu.5) Patří mezi ně např. vápenaté ionty, ATP, cyklický AMP, inositoltrisfosfát (IP3), pyruvát, glutathion a další nízkomolekulární metabolity. Naproti tomu proteiny, nukleové kyseliny, ribozomy a buněčné organely zůstávají bezpečně odděleny.
Na první pohled může tato hmotnostní hranice působit jako pouhé konstrukční omezení. Ve skutečnosti představuje jeden z nejdůmyslnějších evolučních kompromisů. Procházejí pouze molekuly, které vypovídají o okamžitém fyziologickém stavu buňky a jejichž koncentrace se rychle mění i rychle vrací k normálu. Nepřenášejí se naopak molekuly, které by mohly dlouhodobě změnit identitu sousední buňky. Mezerové spoje tak neumožňují sdílet genom, transkriptom ani proteom, pouze průběžně vyrovnávat fyziologický stav sousedních buněk.
Tento rozdíl je zásadní. Buňky si prostřednictvím mezerových spojů nepředávají svou minulost ani budoucnost. Nesdílejí genetickou informaci ani program další diferenciace. Sdílejí jen informaci o tom, co se v jejich nitru odehrává v dané chvíli. Díky tomu mohou synchronizovat elektrickou aktivitu, metabolismus nebo odpověď na signální podněty, aniž by ztratily vlastní buněčnou identitu.
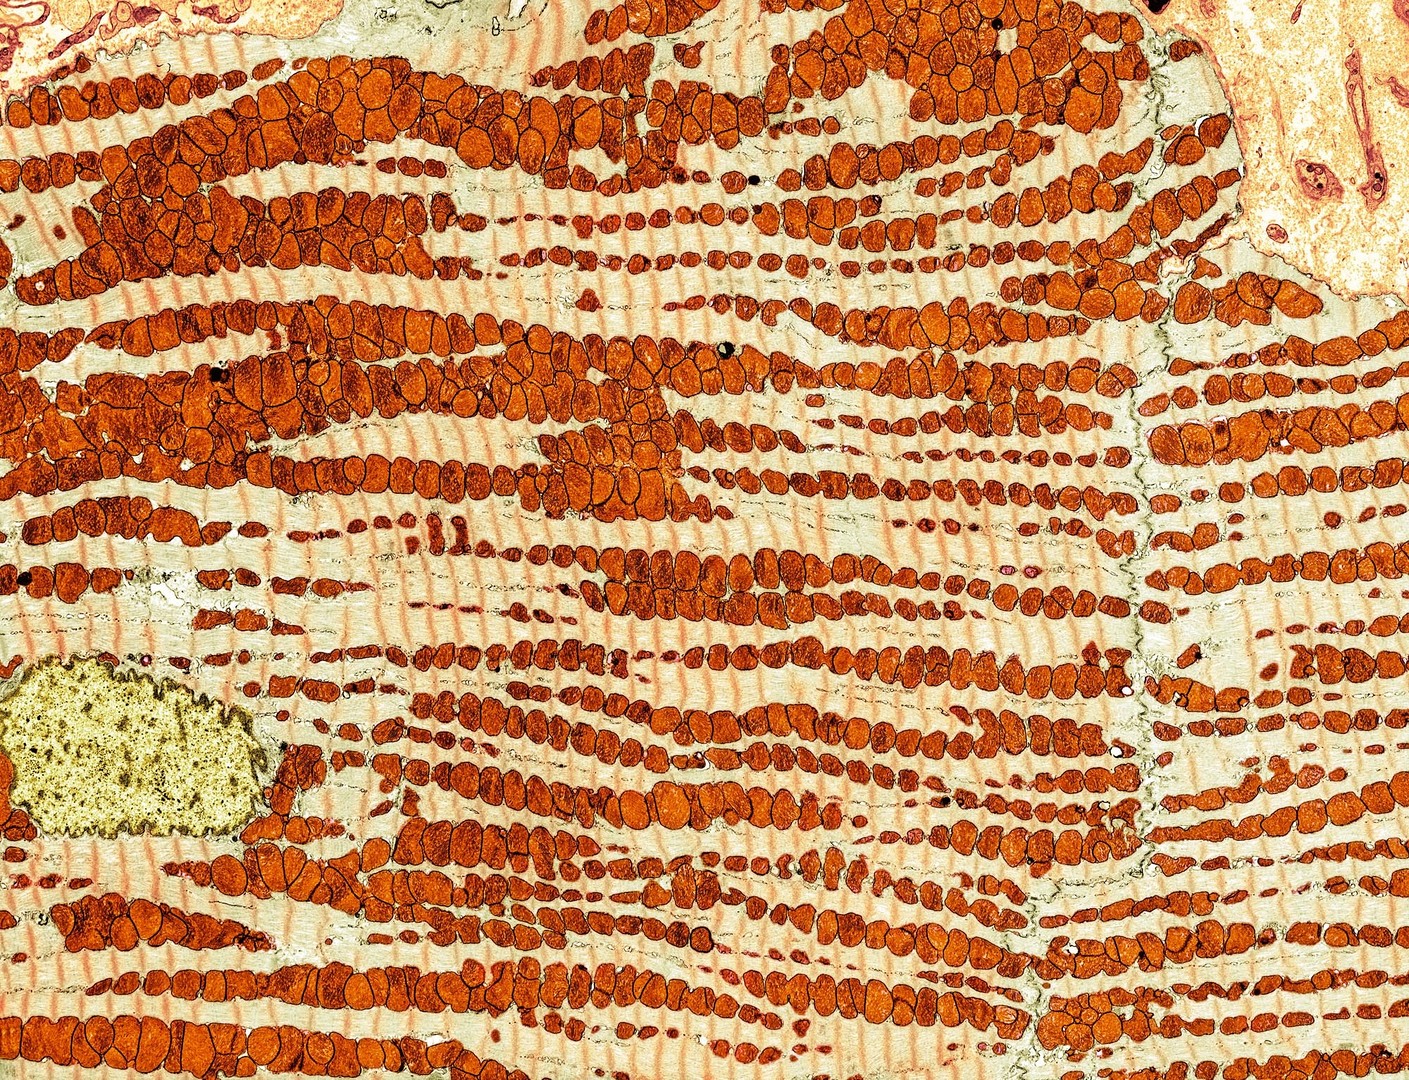
Biologický význam tohoto řešení nejlépe vynikne při pohledu na konkrétní tkáně. Snad nejznámějším příkladem je srdeční sval. Každá srdeční svalová buňka (kardiomyocyt, obr. 3) je anatomicky samostatnou buňkou s vlastním jádrem, metabolismem i membránou. Elektricky se však díky husté síti mezerových spojů chová jako součást mnohem většího celku. Akční potenciál se šíří přímo z cytoplazmy jedné buňky do druhé a miliony kardiomyocytů se stahují téměř současně. Srdce tak není pouhým souborem jednotlivých buněk, ale koordinovaným funkčním systémem. Vznikne-li arytmie, není to obvykle proto, že by jednotlivé buňky přestaly pracovat, ale jejich nesprávnou spoluprací.
Mohlo by se zdát, že čím těsnější propojení buněk evoluce vytvoří, tím lépe organismus funguje. Právě zde je však třeba definovat hranice. Nervová soustava představuje téměř opačný extrém. Neurony potřebují předávat informace přesně určeným partnerům, měnit sílu jednotlivých spojů, vytvářet paměťové stopy a zachovávat vysokou míru individuality. Sdílení cytoplazmy by zde bylo spíše překážkou než výhodou.
Co všechno (nás) spojuje
Konexiny jako rodina transmembránových bílkovin, které tvoří mezibuněčné spoje, ale nejsou univerzálním řešením buněčného propojení. Bezobratlí živočichové používají k tvorbě obdobných mezerových spojů zcela jinou skupinu proteinů – innexiny. Přestože vytvářejí kanály nápadně podobné mezerovým spojům obratlovců, jejich evoluční původ je odlišný. Jde o pozoruhodný příklad konvergentní evoluce: dvě nepříbuzné proteinové rodiny dospěly ke stejnému funkčnímu řešení.
Situaci dále komplikují pannexiny. Ty jsou evolučně blízkými příbuznými innexinů a obratlovci si je zachovali dodnes. Na rozdíl od innexinů však většinou nespojují cytoplazmy sousedních buněk. Fungují převážně jako hemikanály otevírající se do mezibuněčného prostoru a podílejí se například na uvolňování ATP nebo na zánětlivé signalizaci.
Proč tedy obratlovci během evoluce opustili innexiny jako hlavní stavební kameny mezerových spojů a nahradili je zcela novou rodinou konexinů, zůstává dosud otevřenou otázkou. Jednou z možností je, že konexiny nabídly jemnější regulační možnosti potřebné pro stále složitější organizaci tkání a orgánů. V genomu člověka dnes nacházíme jednadvacet genů pro konexiny, jejichž kombinace umožňuje vytvářet kanály s odlišnou propustností, vodivostí i regulačními vlastnostmi. Evoluce tak nezískala pouze nový typ buněčného spoje, ale celý repertoár specializovaných spojů přizpůsobených různým tkáním.
Jejich nejbližší sousedé – astrocyty – však využívají odlišnou strategii. Jsou propojeny rozsáhlou sítí mezerových spojů, umožňující šíření iontů, energetických substrátů i některých nitrobuněčných signálů. Astrocyty propojují cévní zásobení s aktivitou neuronů, podílejí se na regulaci extracelulárního prostředí a rozdělují metabolické zdroje tam, kde jsou právě potřeba. Nervová tkáň tak využívá dva zcela odlišné principy organizace současně – vysoce individualizovanou neuronální komunikaci a kolektivní metabolickou spolupráci gliových buněk.
Neméně elegantní příklad nacházíme ve vyvíjející se samičí pohlavní buňce (oocytu). Savčí vajíčko dlouhou dobu není metabolicky soběstačné. Okolní kumulární buňky mu prostřednictvím mezerových spojů dodávají pyruvát, aminokyseliny i regulační molekuly nezbytné pro zrání. Zdánlivě samostatná pohlavní buňka je ve skutečnosti součástí úzce propojeného buněčného společenství. Teprve krátce před ovulací se tato propojení uzavírají a oocyt se postupně připravuje na okamžik, kdy bude muset fungovat nezávisle.
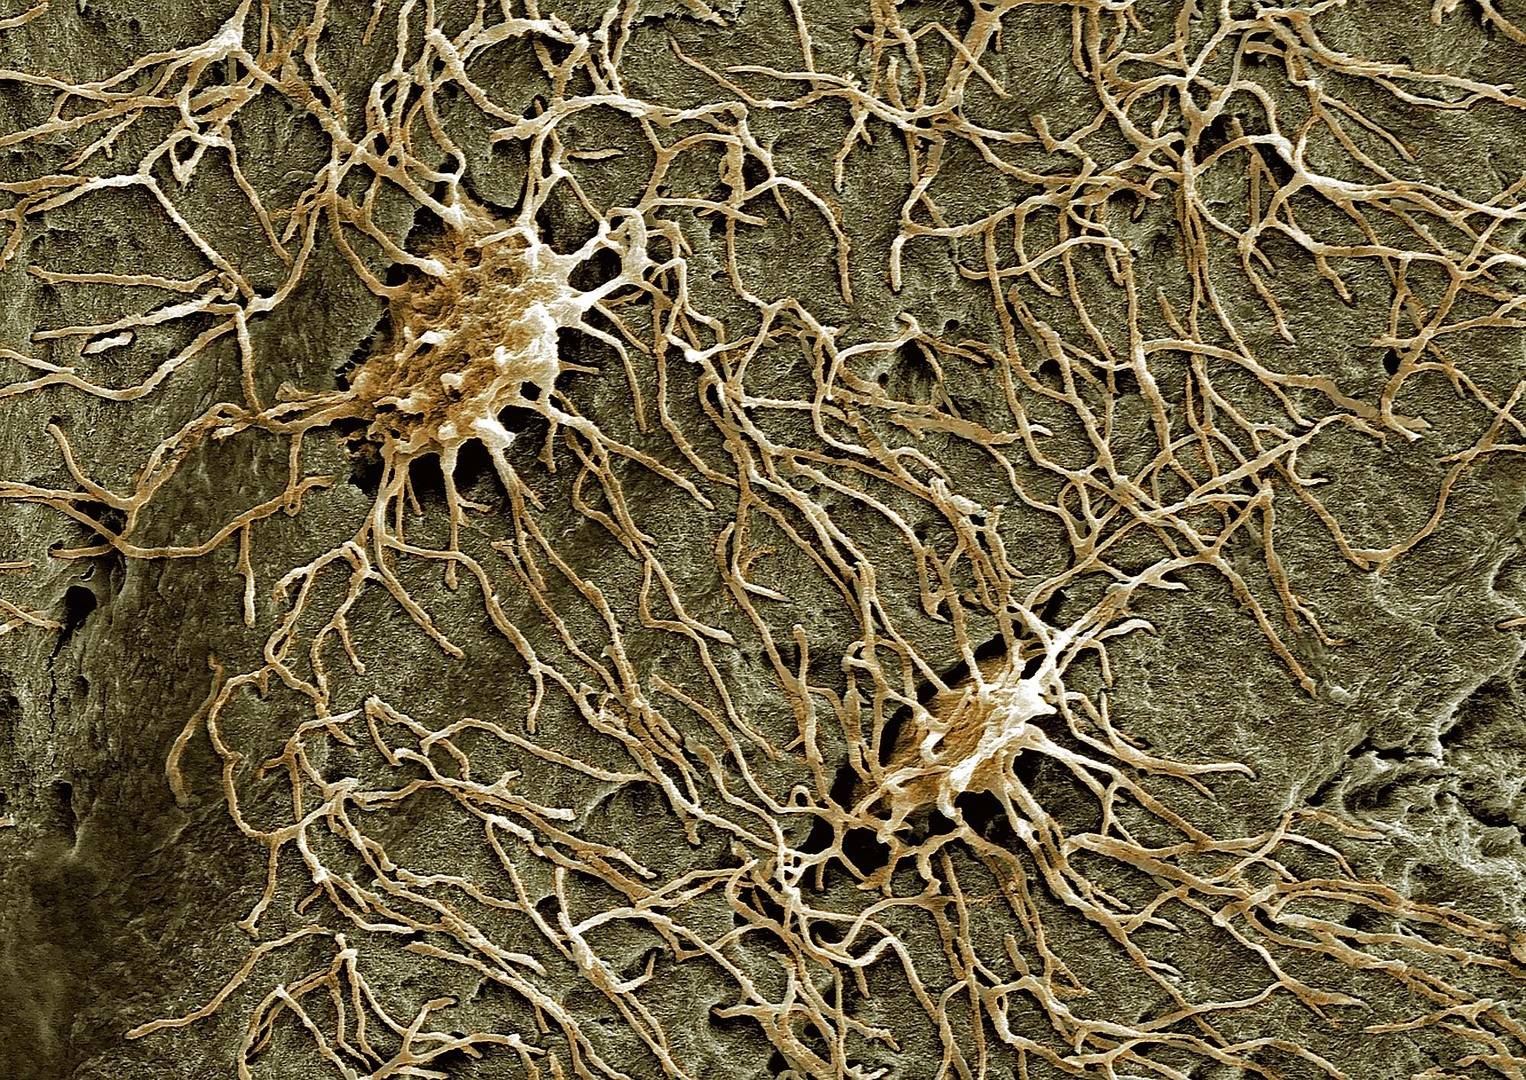
Podobně překvapivou síť vytvářejí osteocyty, uzavřené hluboko uvnitř mineralizované kostní tkáně. Jejich dlouhé výběžky, probíhající systémem kostních kanálků, jsou propojeny mezerovými spoji a vytvářejí trojrozměrnou komunikační síť (obr. 4). Mechanické zatížení působící na jedinou část kostry se tak rychle promítá do odpovědi buněk vzdálených mnoho buněčných průměrů. Kost není pouhou opěrnou konstrukcí těla. Je živým orgánem, který nepřetržitě monitoruje vlastní mechanické namáhání a podle něj řídí svou přestavbu.
Mimořádnou ukázkou významu mezerových spojů je také oční čočka. Její vlákna během zrání ztrácejí jádra i většinu organel, aby zůstala dokonale průhledná. Přesto musejí její buňky po celý život udržovat aktivní metabolismus. To umožňuje hustá síť mezerových spojů, která propojuje prakticky všechny buňky čočky a zajišťuje cirkulaci iontů i metabolitů napříč celou tkání. Průhlednost oka tak paradoxně závisí na jedné z nejlépe propojených buněčných sítí v lidském těle.
Při pohledu na srdce, mozek, vaječník i kost si člověk uvědomí, že mezerové spoje neslouží především ke spojení dvou sousedních buněk. Jejich skutečným výsledkem je vznik buněčných sítí. Teprve propojením stovek, tisíců nebo milionů buněk vznikají vlastnosti, které žádná jednotlivá buňka sama o sobě mít nemůže – rytmická kontrakce srdeční svaloviny, koordinovaná metabolická podpora neuronů nebo kolektivní mechanické vnímání kostní tkáně. Takové vlastnosti nevznikají uvnitř jednotlivých buněk, ale v architektuře jejich vzájemných vztahů, jsou tzv. emergentní.
Jak zásadní význam mají jednotlivé konexiny pro správnou funkci tkání, ukazují tzv. konexinopatie. Např. mutace genu GJB2, kódujícího konexin 26, představují celosvětově nejčastější příčinu vrozené hluchoty. V hlemýždi vnitřního ucha zajišťují mezerové spoje recyklaci draselných iontů, nezbytnou pro převod zvuku na nervový signál. Porucha jediného typu buněčného spoje tak stačí k úplné ztrátě sluchu.
Těsné propojení sdílením cytoplazmy však přináší i nové riziko. To, co umožňuje rychlé šíření užitečných signálů, by stejně snadno mohlo šířit i poškození. Umírající buňka náhle ztrácí schopnost udržovat homeostázu. Prudce vzroste koncentrace cytoplazmatického vápníku, mění se pH i redoxní poměry. Kdyby mezerové spoje zůstaly otevřené, mohly by se tyto změny přenést do okolních buněk a poškodit celou tkáň. Konexinové kanály proto obsahují elegantní bezpečnostní mechanismus. Zvýšená koncentrace vápenatých kationů (Ca2+) i pokles pH jejich otevření rychle mění. Propojení mezi buňkami se uzavírá a poškozená buňka je od svého okolí izolována. Připomíná to uzavírání vodotěsných přepážek v potápějící se lodi – obětována je jediná komora, nikoli celé plavidlo. Schopnost sdílet je tak od samého počátku doplněna stejně důležitou schopností propojení včas přerušit. Právě tato rovnováha mezi otevřeností a izolací se ukazuje jako jeden ze základních principů mnohobuněčného života.
Jak důležitý je tento kompromis, ukazuje srovnání s rostlinami. Také jejich buňky potřebují koordinovat svůj vývoj, sdílet informace a reagovat na změny prostředí. Evolucí u nich ale vzniklo jiné konstrukční řešení. Cytoplazmy sousedních buněk propojují jemné kanálky vznikající již během buněčného dělení (plazmodezmata), které prostupují buněčnou stěnou a vytvářejí přímé spojení mezi sousedními buňkami. Na rozdíl od mezerových spojů nejsou plazmodezmata omezena pouze na malé molekuly. Za určitých okolností jimi mohou procházet také proteiny, transkripční faktory, molekuly RNA a další makromolekuly. Rostlinné buňky si tak mohou předávat nejen informaci o svém okamžitém fyziologickém stavu, ale také molekuly přímo ovlivňující vývoj okolních buněk. Mnohé transkripční faktory určující identitu buněk nebo směr diferenciace putují během vývoje pletiv právě touto cestou. Rostlinný organismus je v tomto směru propojen podstatně těsněji než organismus živočišný.
Taková otevřenost má ovšem svou cenu. Rostlinné viry během evoluce vyvinuly pozoruhodnou strategii, jak tohoto propojení využít. Produkují tzv. movement proteiny, které mění vlastnosti plazmodezmat, zvětšují jejich propustnost a umožňují transport virového genomu z buňky do buňky. Některé viry dokonce vytvářejí tubulární struktury prostupující plazmodezmaty, po nichž se mezi sousedními buňkami přesouvají celé virové částice. To, co původně vzniklo jako prostředek spolupráce mezi rostlinnými buňkami, se současně stalo jednou z hlavních cest šíření rostlinných patogenů.
Rostliny se samozřejmě naučily bránit. Propustnost plazmodezmat aktivně regulují, například ukládáním kalózy6 kolem jejich ústí, čímž mohou jejich průchodnost dočasně omezit. Přesto představují plazmodezmata podstatně otevřenější systém než mezerové spoje. Z evolučního hlediska je to fascinující experiment. Dvě velké vývojové linie mnohobuněčných organismů vyřešily stejný problém dvěma odlišnými způsoby.
Živočichové zvolili mnohem konzervativnější strategii. Mezerové spoje nepřenášejí makromolekuly, neumožňují průchod nukleových kyselin ani celých virionů. Jejich selektivitu často vnímáme pouze jako důsledek velikosti pórů. Lze se však na ni dívat i jinak. Je to způsob, jak umožnit intenzivní spolupráci mezi sousedními buňkami, aniž by to ohrozilo jejich individualitu. Sdílet lze pouze informace, které jsou rychlé, vratné a průběžně regulovatelné. Ne ty, které by mohly změnit samotnou identitu buňky. Během evoluce tak nedocházelo k zvyšování míry propojení buněk. Hledala se optimální propustnost hranic mezi nimi. Na jedné straně tohoto spektra stojí skutečná soubuní (syncytia) – buněčný útvar, který vznikl splynutím několika buněk. Kosterní svalová vlákna, syncytiotrofoblast7 lidské placenty nebo mnohojaderné osteoklasty vznikají úplným splynutím buněk. Zde hranice mezi jednotlivými buňkami téměř mizí. Výhodou je dokonalá koordinace, nevýhodou ztráta buněčné autonomie. Mezerové spoje hranice mezi buňkami zachovávají, ale jsou selektivně propustné. Buňky mohou sdílet metabolity, ionty i signální molekuly, přesto však zůstávají samostatnými jednotkami. Chemické synapse jsou ještě selektivnější. Neuron zde sdílí se svým partnerem pouze přesně definovaný signál. Cytoplazmy obou buněk zůstávají zcela oddělené. Právě tato individualizace umožňuje vznik paměti, učení i mimořádné výpočetní kapacity nervové soustavy.
Podobně důsledně chrání buněčnou autonomii adaptivní imunita. T-lymfocyt musí o své odpovědi rozhodovat samostatně. Jeho aktivace nesmí být jednoduše přenesena na sousední buňky. Přesto i v jeho případě vzniká vysoce organizované kontaktní rozhraní – imunologická synapse. Jejím účelem není sdílení cytoplazmy, ale mimořádně přesná výměna informací při zachování úplné individuality obou buněk.
Při pohledu na tuto rozmanitost je zřejmé, že buněčné spoje nelze chápat jen jako anatomické struktury. Představují různé evoluční odpovědi na tutéž otázku: co si mohou dvě sousední buňky dovolit navzájem sdílet? Možná právě zde leží skutečný význam konexinů. Samy o sobě nejsou nejdůležitější. Jsou jedním z řešení obecnějšího problému, který musela evoluce nalézt při vzniku mnohobuněčných organismů. Nestačilo vytvořit nové buňky. Bylo třeba vytvořit nová pravidla jejich soužití.
Na první pohled se může zdát, že mnohobuněčný organismus představuje vítězství kolektivu nad individualitou. Ve skutečnosti je pravdou spíše opak. Organismus funguje právě proto, že si jednotlivé buňky uchovaly značnou míru autonomie. Každá z nich má vlastní metabolismus, vlastní genovou expresi i vlastní rozhodovací mechanismy. Spolupráce nevzniká zrušením buněčné individuality, ale jejím pečlivě regulovaným omezením tam, kde je to výhodné pro celek. Mnohobuněčnost tedy nevznikla tehdy, když se buňky naučily držet pohromadě. Vznikla tehdy, když se naučily, co si smějí navzájem sdílet. Právě z těchto milionů drobných, evolucí odladěných konexí vzniká konektivita organismu. A možná právě proto lze říct, že organismus není pouze souborem buněk. Je především souborem vztahů mezi nimi.
Poznámky
1) V případě 70kg lidského těla jde o zhruba 30 bilionů buněk plus asi 38 bilionů mikrobů, pozn. red.
2) Tenká vrstva buněčného cytoskeletu těsně pod plazmatickou membránou, pozn. red.
3) Důležité stadium embryonálního vývoje, při němž se jednovrstevná nebo dvojvrstevná zárodečná koule (blastula) mění v zárodek se třemi základními zárodečnými listy (ektodermem, mezodermem a entodermem), pozn. red.
4) Konexon je bílkovinný kanál v buněčné membráně, umožňující průchod informace membránou, pozn. red.
5) Přibližně 1,66 × 10⁻²⁷ g, pozn. red.
6) Složitý cukr (polysacharid typu β-1,3-glukan), který tvoří rostliny v buněčných stěnách, pozn. red.
7) Vnější mnohojaderná vrstva bez zjevných buněčných hranic, pozn. red.
Ke stažení
 článek ve formátu pdf [1,01 MB]
O autorovi
Jan Černý

Další články k tématu
Nestačíš říct „švec“
Jak se bakterie oddávají sexu?
Tunelováním k mnohobuněčnosti
Cesta do Tibetu jako nástroj propagandy
O hrozivé pravěkosti pověstí
Mosty, grafy a mapy
Zůstávám ve spojení
Doporučujeme

Jak se bakterie oddávají sexu?

Cesta do Tibetu jako nástroj propagandy
